摘要:
分子对接只是基于计算机算法的理论预测,不能证明化合物与靶蛋白在现实中发生物理结合。要证明“化合物—靶点”或“蛋白—蛋白”互作,需要建立完整证据链:计算预测 → 体外生物物理验证 → 细胞原位验证 → 结合位点确认 → 功能闭环。本文汇总20+种验证方法,覆盖SPR、BLI、MST、ITC、FP、CETSA、FRET、PLA、Pull-down-MS、DARTS-MS、TPP、LiP-MS、ABPP、Co-IP、X-ray、Cryo-EM、NMR、定点突变等,并给出选择建议。
本文关键结论
1.分子对接是假设生成工具,不是结合证据。
2.证明直接物理结合与测定KD: SPR、BLI、MST、ITC、FP。
3.证明细胞内原位结合: CETSA-WB、CETSA-MS/TPP、FRET/BRET、BiFC、PLA。
4.未知靶点筛选: 小分子Pull-down-MS、DARTS-MS、TPP、LiP-MS、ABPP、TurboID、IP-MS。
4.蛋白—蛋白/蛋白—核酸互作: Co-IP、GST Pull-down、Y1H、Y2H、Dual-LUC、、XL-MS。
5.结合位点确认: X-ray、Cryo-EM、NMR + 定点突变 + SPR/MST/CETSA。
6.功能闭环: 基因敲除/敲低(KO/KD)+ 回补实验。
一、分子对接之后,为什么必须做分子互作实验验证?
在药物机制与生物学研究中,我们经常会看到这样的结论:
“分子对接结果显示,化合物Y能够与核心靶点蛋白X实现稳定结合,结合能低至多少。”
问题是—
分子对接仅仅是基于计算机算法的“理论预测”,它模拟的是“如果结合,可能长什么样”,并不能证明两个分子在现实中真的发生了物理接触。
想要把“化合物—靶点”或者“蛋白质—蛋白质”的相互作用证据链做扎实、过审顶刊,光有电脑里的计算模拟对接图远远不够。我们需要从体外生物物理分子互作实验、体外生化分子互作实验、细胞内分子互作实验、结合位点验证等多个维度,进行严密的实验闭环。
二:证明“直接物理结合”并测定亲和力(KD),选这些金标准方法
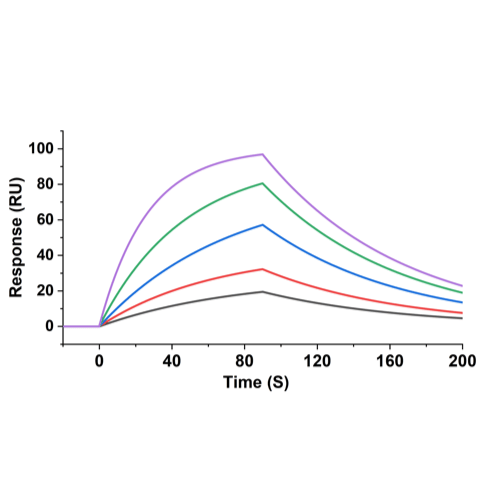
1. SPR(Surface Plasmon Resonance,表面等离子体共振
)蛋白相互作用非常经典的方法
原理:通常将蛋白固定在芯片表面,让不同浓度的分析物(如小分子化合物)流过芯片表面,实时记录结合与解离的全过程。
优势:不仅能精准测定解离平衡常数 KD,还能同时测出结合速率常数(kon)和解离速率常数(koff),是国际顶级期刊认可度极高的“金标准”。
所以,SPR最大的优势,还可以看这个化合物“结合的快不快,解离的慢不慢”。
如想直接证明:
“Compound Y directly binds to protein X.”
- SPR是一种很有分量的证据。
适用:小分子—蛋白、蛋白—蛋白、蛋白-核酸、抗体—抗原等各类生物样品分子互作实验。
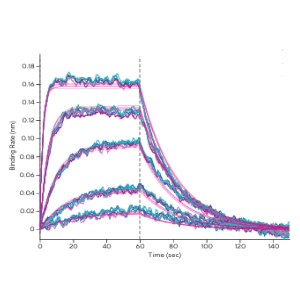
2. BLI(Bio-Layer Interferometry生物膜干涉技术,如Octet系统)
原理:基于光干涉原理,实时监测生物分子结合引起的干涉光谱变化。原理和SPR类似。
优势:不仅能精准测定解离平衡常数 KD,还能同时测出结合速率常数(kon)和解离速率常数(koff)。通量高、对复杂样品容忍度好,非常适合蛋白-蛋白、抗原-抗体以及小分子筛选。
适用:蛋白—蛋白、蛋白-小分子、DNA🧬、RNA。纳米颗粒等样品,尤其适合做抗体筛选。
3. MST(icroscale Thermophoresis,微量热泳动,样品消耗少)
原理:基于分子结合后在微小温度梯度场中的热泳动行为改变来测定亲和力。
优势:极省样品,对于非常难纯化、产量极低的靶蛋白极其友好,且无需固定在芯片上,溶液中自由状态下测定。
适用:难纯化蛋白、膜蛋白、裂解液体系等。佰莱博生物可提供免纯化MST技术方案。

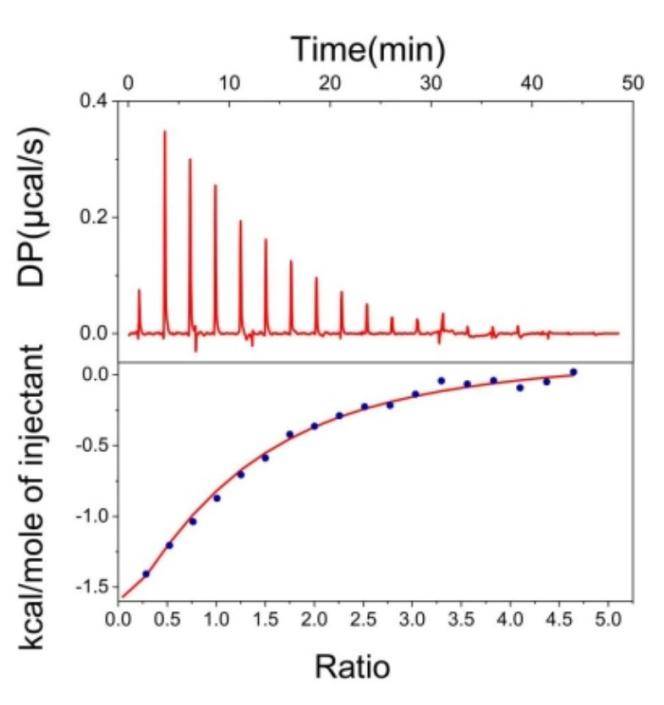
4. ITC(Isothermal Titration Calorimetry等温滴定量热,还能知道为什么结合)
原理:直接测量分子结合过程中释放或吸收的微量热量从而计算亲和力KD值。
优势:不仅能测KD,还能一次性拿到结合计量比n、焓变(ΔH)和熵变(ΔS)等全套热力学参数,不光能告诉你结不结合,还能算出结合时放了多少热、吸了多少热
缺点也很明显,蛋白消耗大!
5. FP(Fluorescence Polarization,荧光偏振)
原理:荧光标记的小分子或肽与较大蛋白结合后,分子旋转减慢,偏振值增加。
优势:均相、无需固定、通量较高,适合小分子—受体竞争结合和酶活性抑制分析。
适用:小分子筛选、竞争结合实验。
面对SPR、BLI、MST、ITC、FP这么多技术,“我的实验到底该选哪个方法?”佰莱博生物会为您带来五大亲和力测定平台的深度解析与科学选择。
三:想证明“在细胞或生理环境里真的结合了”,用这些细胞级技术
⚠划重点!
体外能与纯化蛋白能结合,不代表化合物进入细胞后能结合
6. CETSA(细胞热迁移技术)
原理:化合物与靶蛋白结合后,会改变蛋白质的空间构象和热稳定性。通过检测加热后可溶性蛋白的剩余量,判断药物是否为蛋白提供了“热保护”。
应用:可做温度梯度或药物浓度梯度(固定一个温度),是验证细胞内靶点结合的实用利器。
7. 其它细胞内与原位互作验证技术(蛋白与蛋白互作)
为了多角度证明分子在细胞内的真实结合,佰莱博生物还提供丰富的原位和细胞水平互作技术:
FRET、BRET(荧光/生物发光共振能量转移):就像在分子上安了两个小灯泡,只要它们靠得足够近(小于10 nm),能量就可以传递、产生荧光;离得远,信号就消失。
BiFC、Split-Luc(荧光/荧光素酶互补实验):将完整的荧光蛋白或荧光素酶“一分为二”,只有两个分子发生相互作用,两半才拼到一起,发出光信号。
PLA(邻位连接技术):用特异性抗体 + 带 DNA🧬 标签的二抗,可以直接在细胞原位检测细胞内源蛋白的相互作用,输出点状荧光,结果一目了然。
HiBiT NanoLuciferase系统:灵敏度极高,适合快速定量检测蛋白质相互作用或标签标记。
四、 连靶点是谁都不知道?用这些技术“钓靶”与反向筛靶点
如果你的化合物(如中药有效成分、天然产物)表现出极强的生物学活性,但完全不知道它的靶蛋白是谁,可以通过以下高通量组学方法“大海捞针”:
8. 小分子 Pull-down-MS 与化学生物学探针
原理:对化合物进行结构改造(如连接Biotin等标签)制成探针,与细胞裂解液孵育后进行磁珠富集,再结合质谱(LC-MS/MS)鉴定出捕获的蛋白。
小分子Pull-down → SDS-PAGE → LC-MS/MS
就可能得到一批候选靶蛋白。
如果已经怀疑某个蛋白是靶点,则可以直接:
Pull-down+Western blot。
⚠这里有一个关键坑点:
化合物加上linker以后,还是不是原来的化合物?
因此最好先确认修饰后的探针仍然保留生物学活性。
同时再做一个竞争实验:
探针+蛋白+过量未修饰原药。
如果原药能够把蛋白竞争下来,特异性证据会强很多。
9. DARTS-MS(药物亲和反应靶标稳定性分析,不需要提前修饰化合物)
原理:小分子与靶蛋白结合后,靶蛋白对蛋白酶水解的抵抗力会增强。
就相当于小分子给蛋白穿了一层“防弹衣”,没那么容易被蛋白酶消化
无需对化合物进行化学修饰,直接对混合蛋白池进行酶解与质谱分析,对结构复杂的天然产物极为友好。
10. TPP(CETSA-MS热蛋白质组学,全细胞的高温大筛查)
TPP:将CETSA的思想扩展到全蛋白质组水平,一次性在全细胞中筛查出受化合物影响、热稳定性发生改变的所有候选靶蛋白。
✅CETSA-WB通常是:
“我怀疑X蛋白是靶点,所以专门检测X。”
✅TPP/CETSA-MS更像:
“我不知道靶点是谁,看看整个蛋白质组里面哪些蛋白加药以后热稳定性发生了变化。”
- 11.LiP-MS(有限蛋白水解质谱,靠“酶切保护”抓构象变化)
小分子跟蛋白结合,蛋白的形状就会变,
或者结合的位置被挡住了。
这时候往细胞提取物里加蛋白酶(比如蛋白酶K)去切,
原本容易被切碎的地方,因为有小分子“贴身保护”,就切不动了。
最后通过质谱一比对,
就能直接看出来到底是哪个蛋白、哪一段被化合物给结合了。
- 12.ABPP(基于活性的蛋白质谱分析):
- 原理:利用光交联探针和点击化学技术,化合物和靶蛋白结合之后,通过紫外照射,化合物和靶蛋白能够形成共价键,从而能够把化合物与靶蛋白属于弱结合,或者属于“快结合、快解离”模式的化合物的靶蛋白垂钓出来。
- 优势:适合弱结合、瞬时结合模式靶蛋白的垂钓。
五、 蛋白质与蛋白、蛋白与核酸的分子互作该怎么做?
Co-IP(免疫共沉淀)、GST Pull-down:经典的蛋白质互作验证方法,验证两个已知蛋白的结合。
酵母单杂交(Y1H):用于研究DNA🧬与蛋白之间的相互作用(如转录因子与启动子)。
酵母双杂交(Y2H):用于高效筛选和验证未知的蛋白质-蛋白质相互作用。
Dual-LUC(双荧光素酶报告实验):植物及哺乳动物系统中验证转录调控关系的黄金标准。
TurboID邻近标记(Proximity Labeling, PL):利用工程化生物素连接酶,将活细胞内瞬时、微弱的相互作用分子打上生物素“钢印”, 用于筛选互作蛋白。
交联质谱(XL-MS / CL-MS / CXMS):用化学交联剂像胶水一样把瞬间路过、抓不住的瞬时复合物先定格住,然后直接上质谱,连它们三维空间里到底是哪个氨基酸和哪个原子贴在一起,都给你扒得清清楚楚。
六、想知道“具体结合在哪里”,还得上结构生物学
证明X和Y结合,只完成了一半。
更进一步的问题是:
到底结合在蛋白哪个口袋?哪些氨基酸参与了作用?
这时候可以考虑:
X-ray晶体学、Cryo-EM、NMR。
如果能够拿到高分辨率的蛋白互作复合物结构,就可以直接观察:
氢键、疏水作用、盐桥以及具体结合口袋。
⚠但结构生物学实验难度高、门槛大。所以绝大多数实验室更常用这套方案:
分子对接+分子动力学模拟预测结合位点 → 表达纯化突变体蛋白 → 再做SPR/MST/CETSA→比较突变体蛋白及野生型蛋白与另外一个分子结合能力的差异。
例如预测化合物主要与某个氨基酸结合。
把这个位点突变成丙氨酸之后:
WT蛋白能结合,Mutant蛋白结合明显下降。
这时候证据就比单纯的分子对接或者分子动力学模拟强得多。
七、总结:完整证据链
要想让审稿人无可挑剔,建议采用以下“组合拳”策略:
互作蛋白筛选:已知蛋白筛选互作蛋白:IP-MS、TurboID/XL-MS;已知化合物筛靶蛋白:小分子PUll-down、DARTS-MS、LiP-MS、TPP及ABPP等
↓
计算预测:分子对接与分子动力学模拟(MD)预测结合模式。
↓
体外验证(定“有无”与“强弱”):利用 SPR / BLI / MST / ITC 测定真实解离常数KD。
↓
细胞验证(定“环境”):通过 CETSA、FRET、BiFC、PLA 证明细胞内真实互作。
↓
位点确认(定“机制”):结合分子对接+分子动力学模拟预测的氨基酸位点,构建定点突变蛋白,再次用 SPR/MST 证明突变后结合力显著下降。
↓
功能闭环(定“药效”):通过基因敲除/敲低(KO/KD)或回补实验,证明该靶点的确决定了药物的最终生物学效应。
综上所述,分子对接只能提出假设,真正的结合证据需要SPR/BLI/MST/ITC/FP等体外生物物理实验、CETSA/FRET/PLA等细胞水平验证,以及靶点筛选、位点突变和功能验证闭环。佰莱博生物拥有逾7年分子互作实战经验、3000+蛋白靶点检测、8000+分子互作分析,累计服务客户2000+,荣获ISO9001质量认证,SCI案例丰富等优势。公司利用SPR(Biacore 8K/1K/T200)、BLI(Octet R8/RED96e)、MST(Monolith NT.115/X)、ITC(Nano ITC/PEAQ-ITC)及FP荧光偏振五大亲和力分析平台及高分辨率质谱检测平台(Orbitrap Astral或timsTOF Pro2)等先进技术,提供从互作靶点筛选、化合物筛选、蛋白互作组学,到蛋白表达纯化、化合物合成、多肽合成,再到分子互作检测的一站式服务。无论是药物靶点筛选、药物与靶蛋白结合验证,还是机制研究中的亲和力测定,佰莱博生物均可为您提供可靠、可引用的实验数据。欢迎联系佰莱博生物,让分子互作证据链更完整。
八、FAQ:化合物与靶点互作验证常见问题
Q1:分子对接能证明化合物与蛋白直接结合吗?
不能。分子对接只是理论预测,必须用SPR/BLI/MST/ITC等分子互作实验验证。
Q2:只做SPR就能发高分文章吗?
不一定。顶刊通常要求体外结合+细胞原位+位点+功能闭环。
Q3:样品很少,选什么方法?
优先MST,也可考虑BLI或免纯化MST方案。
Q4:想看结合快慢,选什么?
SPR或BLI,可测kon/koff。
Q5:想看结合热力学,选什么?
ITC,可测KD、n、ΔH、ΔS。
Q6:未知靶点怎么筛?
根据化合物是否可修饰、结合强弱选择小分子Pull-down-MS、DARTS-MS、TPP、LiP-MS、ABPP。
Q7:如何验证关键氨基酸?
分子对接+MD预测→定点突变→SPR/MST/CETSA比较结合差异→功能实验。
评论 (0)
登录后参与评论